出瓶那一天,根圈開始被誰占據?
出瓶那一天,根圈開始被誰占據?
蝴蝶蘭從瓶內走進水草:出瓶馴化期間,根圈微生物如何開始建立?
野生蘭花的生命,通常從遇見真菌開始
蘭科植物的種子極小,儲藏養分也極少。
在自然環境中,多數蘭花種子必須遇到相容的菌根真菌。常見的夥伴包含過去常被統稱為 rhizoctonia 類真菌的幾個擔子菌類群,如 Tulasnella、Ceratobasidium 與 Serendipita 等。
這些真菌協助種子取得碳源與礦物養分,使它得以完成萌發與早期幼苗發育。
在自然界裡,真菌不是錦上添花,往往是生命得以開始的條件,而我們人類後來利用含糖培養基繞過了這個限制。
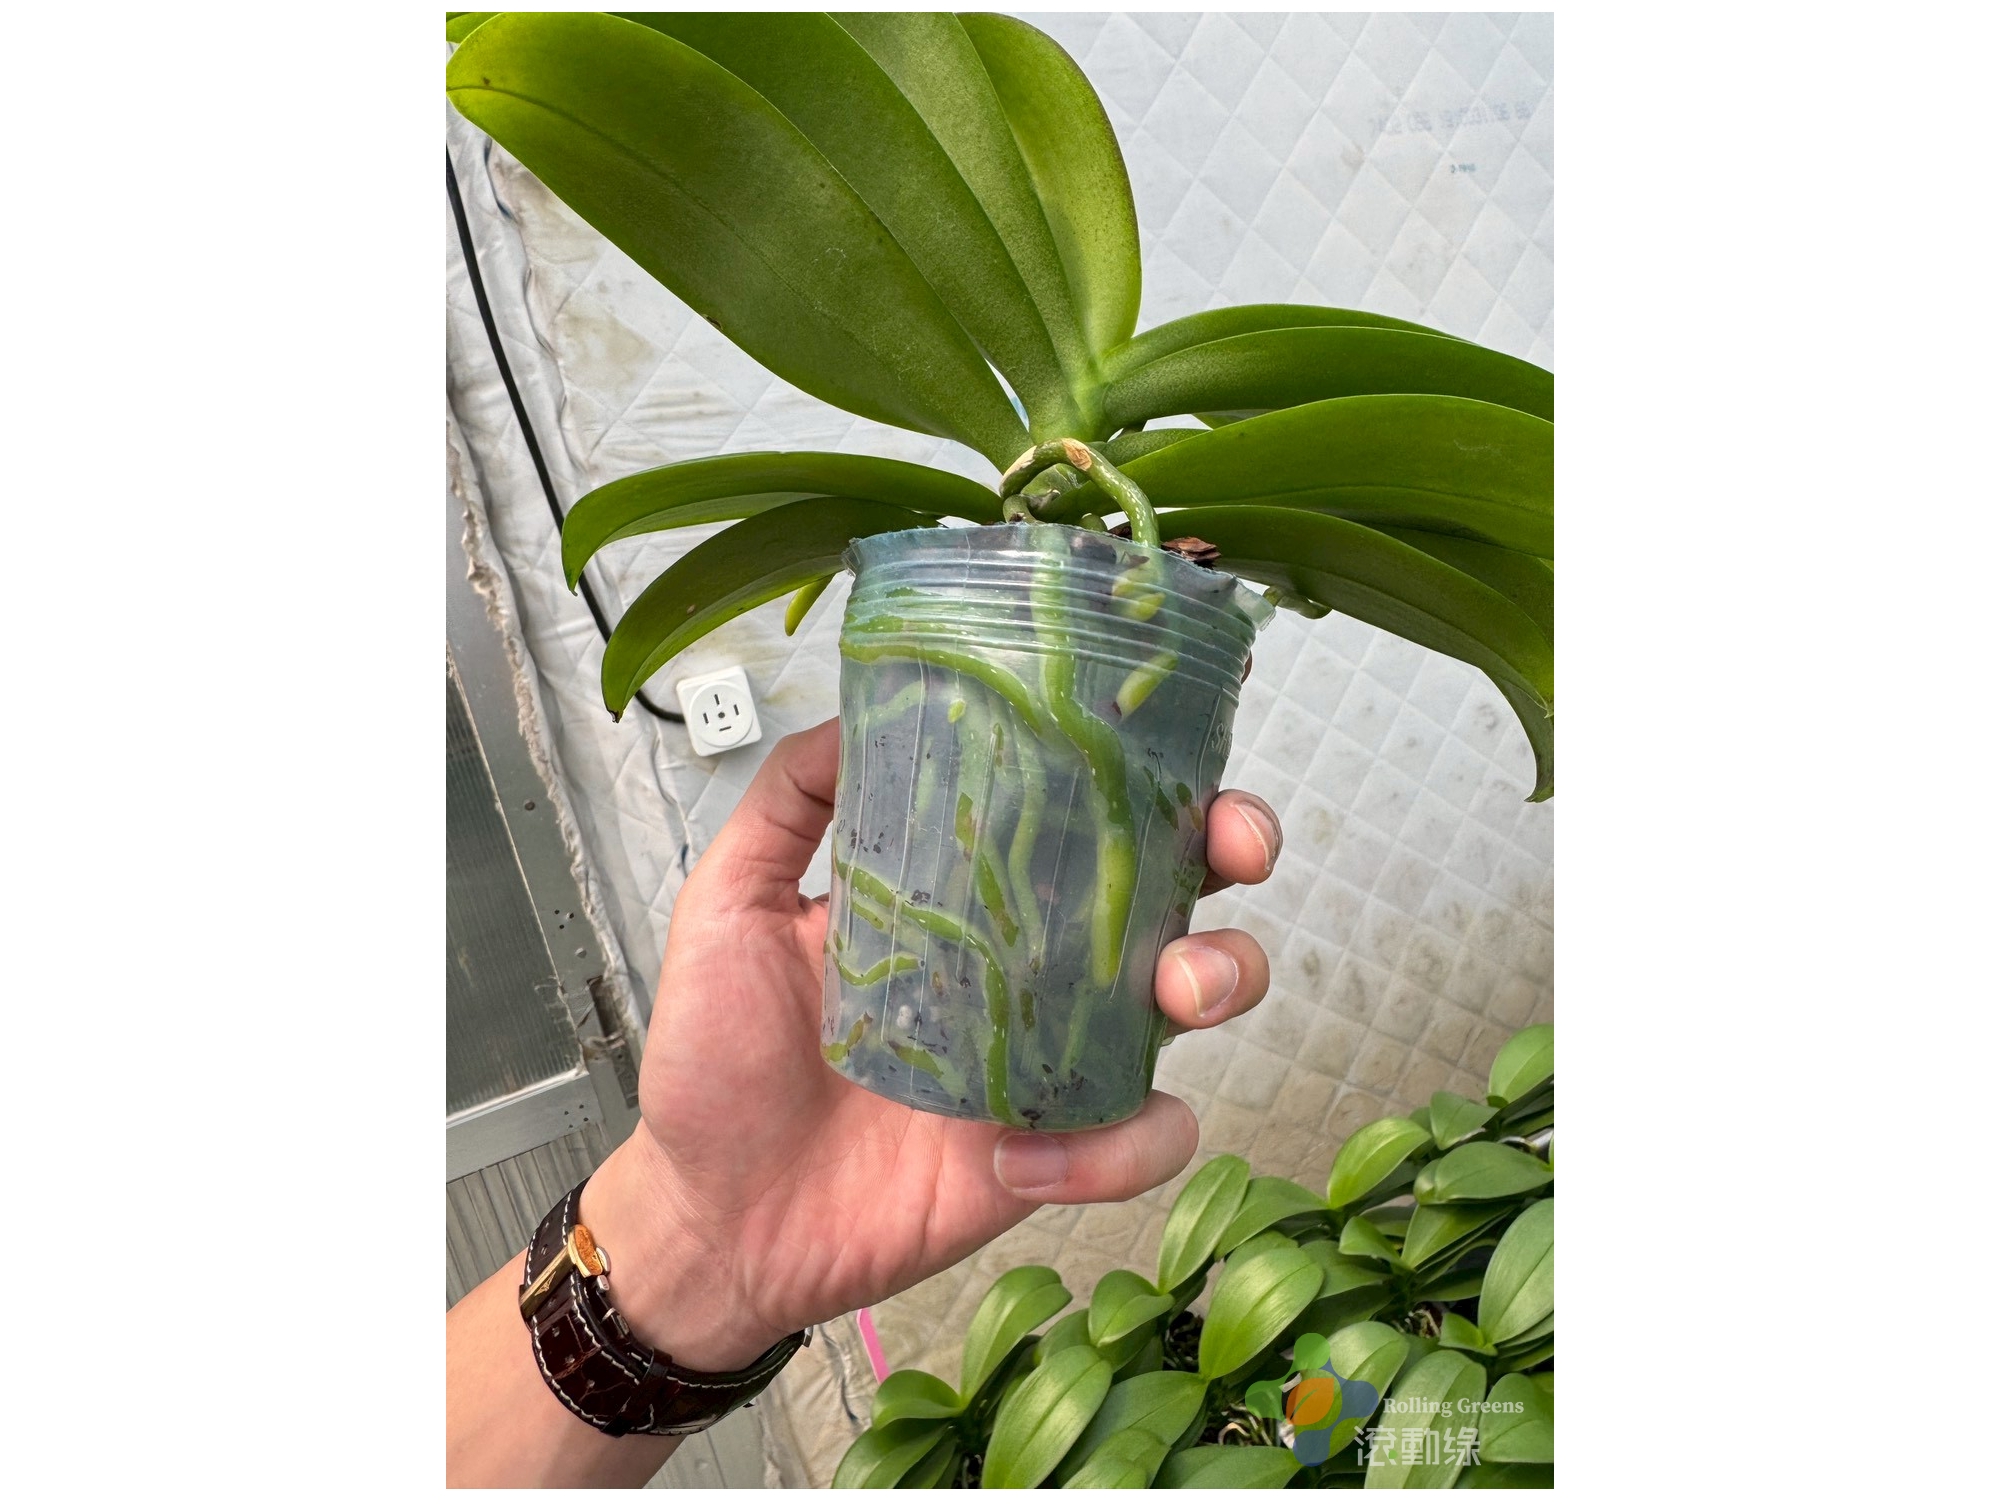
組培如何繞過這段關係
台灣是全球蝴蝶蘭種苗的重要輸出地,而商業生產使用的苗,絕大多數是分生苗,不是直接由種子培育而來。
它的起點可能是一段花梗上的潛伏芽。業者將花梗送入組培場,誘導腋芽萌發成芽體,再經由擬原球體或不定芽反覆增殖。整個流程會經過多階段培養,往往歷時一年以上,全程在含糖培養基與密閉容器中完成。
對多數蘭園而言,這段過程不在自己的管理範圍內。瓶苗通常由專業組培場生產,再交由蘭園進行出瓶、馴化與後續育成。
組培的目標是維持無菌,實務上也能做到非常低的微生物負荷。但接近無菌與絕對無菌並不是同一件事。有些內生微生物數量低、難以培養,也不一定造成肉眼可見的污染。
不過,對根圈管理而言,真正重要的不是瓶苗是否完全不存在任何微生物,而是它尚未形成成熟、複雜的根圈群落。
出瓶苗的根,微生物定殖歷史只有幾個月,而且形成於一個外來微生物輸入極低、群落複雜度遠低於溫室環境的密閉容器裡。
沒有成熟群落,就缺少成熟群落所能提供的生態阻力。
根圈環境中許多棲位尚未被佔據,初期資源競爭與微生物之間的制衡也還沒有充分建立。這樣的系統,對最早進入並成功建立的微生物特別敏感。
出瓶:同時開始的兩場馴化
瓶內是一個非常特殊的生長環境:近乎飽和的濕度、穩定的溫度、缺乏氣流,以及直接由培養基供應的水分、糖與養分。在這種環境中發育的植株,也形成了對瓶內條件的適應。
出瓶苗的角質層通常較薄,氣孔調節能力尚未完全適應溫室條件;根系過去面對的也是高濕,且能直接取得水分與養分的培養環境,而不是具有乾濕循環與空氣流動的盆栽介質。
這就是出瓶後需要進行馴化的原因。蘭園必須在較高濕度下開始,逐步增加通風與光照,使植株適應溫室環境。
這一場馴化,蘭園已經管理得很熟悉。
但同一段時間裡,還有另一場馴化正在蘭花的根圈發生,而它很少被明確寫進生產管理流程。
出瓶上盆時,環境通常具備高濕、溫暖、組織幼嫩等條件,根系也可能因清洗、分苗與上盆操作產生微小損傷。隨著根系活動、灌溉與肥培陸續進入系統,微生物開始取得水分、附著空間與可利用的養分。
一場是植物的生理馴化。另一場是根圈微生物群落的建立。它們共用同一個時間窗口,而早期定殖會塑造群落後續的演替方向。
水草與根被:一個會被定殖的棲地
出瓶小苗被種進去的材料,比多數人以為的複雜。
我們習慣將水草視為「介質」,彷彿它只是一種被動承載根系的填充物。但水草不是無機顆粒,而是泥炭苔屬(Sphagnum)苔蘚經過採收與乾燥後保留下來的植體。
它的葉片主要由大型透明細胞構成。這些細胞在成熟後失去內容物,由細胞壁支撐形狀,並透過孔洞與外界相通。這種構造讓水草能夠吸收並保留遠高於自身乾重的水分。
換一個角度看,它也代表了一種表面積極大、孔隙彼此連通,並能長時間保留水分的多孔材料。對細菌與真菌菌絲而言,它不只是一種栽培介質,也是一片可以附著、移動、利用資源與互相競爭的地形。
它經過採收、乾燥、壓縮與長途運輸,最後進入一個由人為澆水、施肥、溫度與上盆方式共同控制的塑膠盆中。
水草原本的物理結構與部分化學特性仍然存在,但活體代謝與主動調節環境的能力已經消失。取而代之的,是灌溉、肥培、溫度、壓實程度與根系活動持續重新塑造其中的微環境。
養分與溫度進入了系統,氧氣則呈現週期性而且分布不均。剛澆完水時,部分大孔隙被水占據,氣體擴散反而下降;隨著水分排出與蒸散,空氣才重新進入介質。
因此,水草是一個具有明顯選擇壓力,而且被管理方式持續重塑的棲地。
它不寬容,但它可住。
而這個棲地不只有水草。
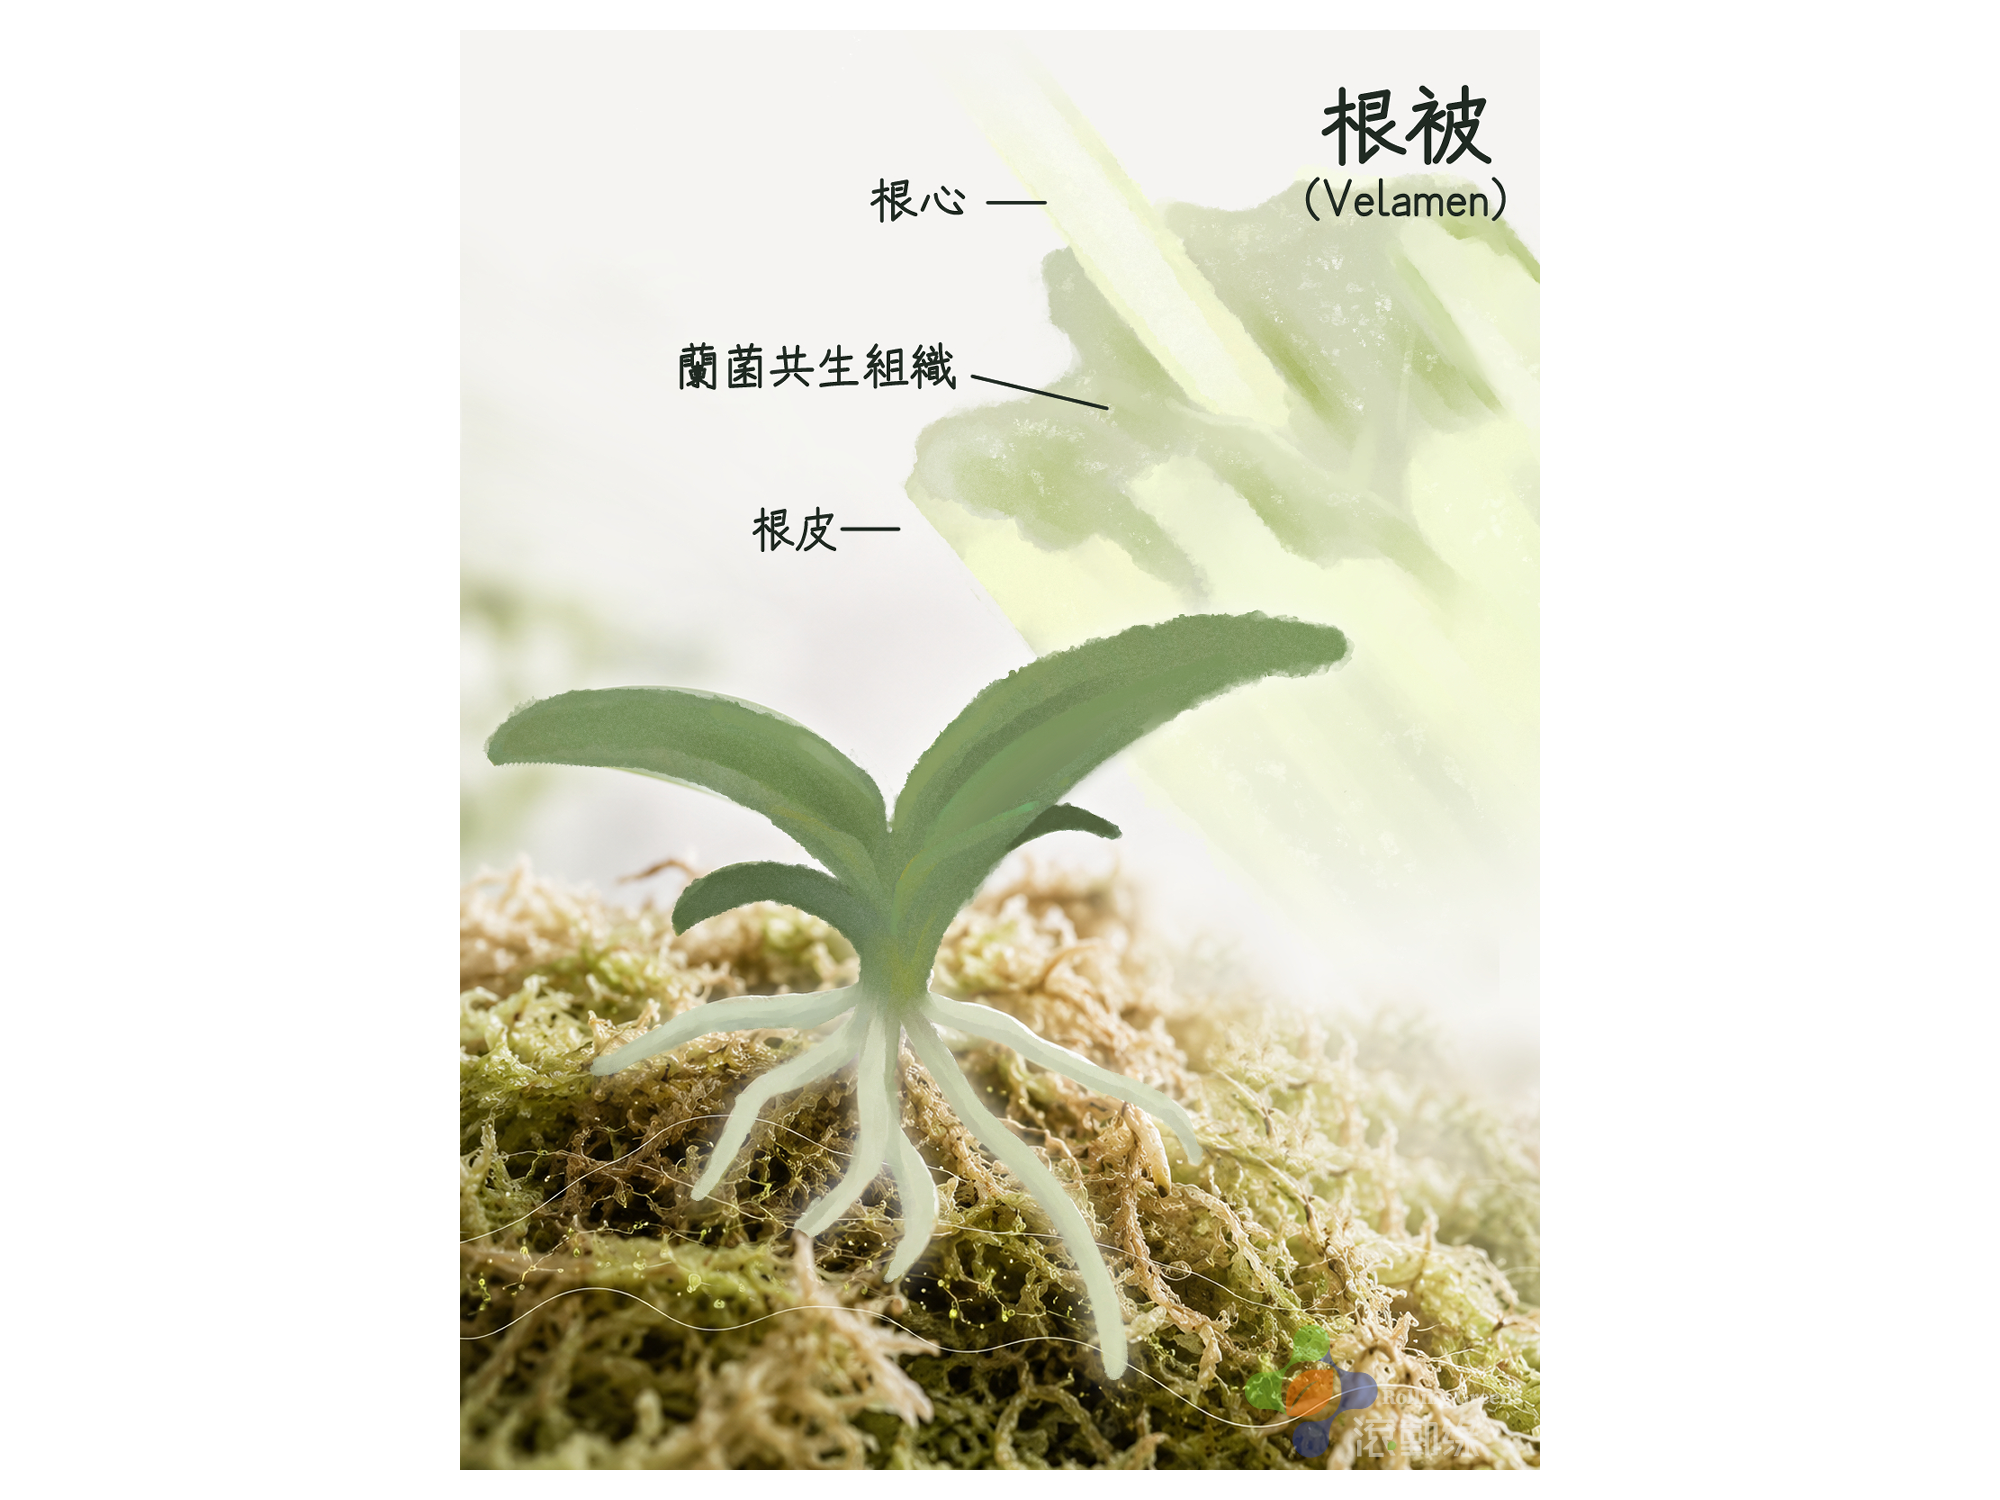
蝴蝶蘭是附生蘭,其氣生根外層具有一圈稱為根被(velamen)的多層死細胞組織。
根被有助於降雨或澆水時快速吸收與暫存水分,也能提供機械保護並減緩乾燥。它同樣是一個高度多孔的表面。
當根被與潮濕的水草接觸時,兩個多孔表面形成大量交界面。水分、肥料離子、有機殘留物,以及可能進入交界面的根系分泌物,在這些微小空間中形成不均勻的資源分布,提供微生物附著與生長的棲位。
出瓶苗與新介質不可能在溫室中長期維持瓶內的微生物狀態。
它們會被來自植株本身、灌溉水、管線內壁、空氣、水草、操作環境與周圍生產系統的微生物逐步定殖。
變數不是「有沒有微生物」,而是:哪些先建立、之後如何演替,以及最終形成什麼功能。
這對蘭園管理意味著什麼?
出瓶後的幾週,蘭園會管理濕度、光度與通風,目標是提升育成率。
但同一段時間裡,根圈群落也正在快速建立。
這段初始歷史是否會反映在育成率、根系健康與病害表現上,其實可以由蘭園直接測試:在出瓶批次中保留對照組,持續追蹤到中苗與大苗階段。
每一次換盆都是一次生態擾動
換盆不會清除原有群落,但會改變棲地、資源與新微生物的進入機會。
因此,出瓶不是唯一的管理窗口。小苗換中苗、中苗換大苗,同樣是可以重新影響根圈環境的節點。
水草規格不只是成本問題
纖維長度、碎屑比例、填充密度、復水後容重,加上澆水方式,共同決定水草中的空氣—水分平衡能維持多久。
相同重量的水草,可能因等級、纖維完整度與上盆方式不同,形成截然不同的根圈環境。只看產地或單位價格,判斷不了這件事。
培養皿上的拮抗能力只是起點。
進入溫室後,一個菌株還必須面對介質、肥培、灌溉、原有微生物與宿主篩選。
真正該關心的,不只是它能不能在培養皿中抑制某個病原,而是它在實際施用條件下,能否到達目標位置、維持足夠活性、與根系及既有群落互動,並在生產波動下產生可重現的功能。
蘭科植物花了數千萬年,演化出一套在自然條件下高度依賴微生物的生存方式。
商業育苗為了效率與一致性,利用組織培養繞過了這段自然萌發關係。
然後,在某一個上午,一株根圈群落尚未成熟的小苗被移出瓶內,放進一個孔隙密布、能長時間保留水分,並開始接受灌溉與肥培的多孔材料之中。
接下來,它開始遇見自己的鄰居。
我們蓋了一座城市,卻很少管理最早進場的住戶。
當然,沒有人能決定一整座城市的所有成員。
但我們確實可以開始觀察:最初進場的是哪些微生物、它們如何演替,以及不同的介質與管理方式,會把這座城市帶往什麼方向。
這是滾動綠正在推進的方向。
不等病害發生後才尋找抑制方法,而是回到出瓶與換盆這些關鍵節點,研究如何透過有目的的微生物與介質管理,建立更穩定、可預測的根圈環境。
越早理解並管理群落建立的條件,我們越能把後段生產的不確定性,轉化成可以觀察、驗證與調整的管理變數。
參考資料與延伸閱讀
Chamara, R. M. S. R., Rammitsu, K., Minobe, M., Kinoshita, A., Kotaka, N., Yukawa, T., & Ogura-Tsujita, Y. (2024). Mycorrhizal Fungi of Phalaenopsis japonica (Orchidaceae) and Their Role in Seed Germination and Seedling Development. Diversity, 16(4), 218.
Tokuhara, K., & Mii, M. (1993). Micropropagation of Phalaenopsis and Doritaenopsis by culturing shoot tips of flower stalk buds. Plant Cell Reports, 13, 7–11.
Wu, P. H., Huang, D. D., & Chang, D. C. (2011). Mycorrhizal symbiosis enhances Phalaenopsis orchid’s growth and resistance to Erwinia chrysanthemi. African Journal of Biotechnology, 10, 10095–10100.
Fukami, T. (2015). Historical Contingency in Community Assembly: Integrating Niches, Species Pools, and Priority Effects. Annual Review of Ecology, Evolution, and Systematics, 46, 1–23.
Debray, R., Herbert, R. A., Jaffe, A. L., Crits-Christoph, A., Power, M. E., & Koskella, B. (2022). Priority Effects in Microbiome Assembly. Nature Reviews Microbiology, 20, 109–121.
Trivedi, P., Leach, J. E., Tringe, S. G., Sa, T., & Singh, B. K. (2020). Plant–Microbiome Interactions: From Community Assembly to Plant Health. Nature Reviews Microbiology, 18, 607–621.
Clymo, R. S., & Hayward, P. M. (1982). The Ecology of Sphagnum. In A. J. E. Smith (Ed.), Bryophyte Ecology. Chapman & Hall.
Verhoeven, J. T. A., & Liefveld, W. M. (1997). The Ecological Significance of Organochemical Compounds in Sphagnum. Acta Botanica Neerlandica, 46(2), 117–130.
Zotz, G., & Winkler, U. (2013). Aerial Roots of Epiphytic Orchids: The Velamen Radicum and Its Role in Water and Nutrient Uptake. Oecologia, 171, 733–741.
Joca, T. A. C., de Oliveira, D. C., Zotz, G., Winkler, U., & Moreira, A. S. F. P. (2017). The Velamen of Epiphytic Orchids: Variation in Structure and Correlations with Nutrient Absorption. Flora.
補充說明
本文整合蘭花菌根生物學、組織培養馴化、Sphagnum 介質特性與微生物群落組裝研究,提出商業蝴蝶蘭生產上的管理觀點。
出瓶初期建立的根圈群落,究竟會在多大程度上影響後續育成率、根系健康與病害表現,仍需要在商業蝴蝶蘭—水草系統中進行直接追蹤與驗證。
相關文章